Plan du chapitre
- Introduction et problématique
- I – Les mécanismes de diversification
- II – Les transferts génétiques horizontaux au cours de l’évolution
- III – Les endosymbioses et la complexification des génomes
- Exercices
- Entrainements pour le bac
- Pour aller plus loin
Cours et schémas en version imprimable
Cours à imprimer (version 2026)
– Cours à imprimer (version 2025)
Suite à une proposition d’élève, voici une vidéo de la chaine bio logique faite par un professeur de lycée et d’université en SVT
Lien vers le padlet des arguments du thème 1
Activités du chapitre
Activité : La digestion des makis, un exemple de transferts horizontaux chez les bactéries + Activité 1 – corrigé
– Activité : La syncitine, le résultat d’une infection virale passée
– Activité : Tableau de comparaison (non fait en 2026)
– Activité – Exemple de sujet de type 1 sur ce chapitre
(pas de polycopié ou de correction – intégré dans le cours)
– Activité : Complexification des génomes : transferts horizontaux et endosymbioses
– Activité – La féminisation des populations de cloportes + corrigé
Sujet de Bac – Polynésie 2021
Ressources du TP 7 – Endosymbiose et transfert de gènes (non réalisé en 2026)
– Correction du TP (Merci à Esméralda et Chloé)
– lien vers les séquences à utiliser pour ce TP sur Geniegen
– lien vers Geniegen (en cas de problème sur le lien précédent) puis écrire « Rubisco » dans la barre de recherche et sélectionner les 2 pack et charger les séquences
TP 8 – Théorie de l’endosymbiose et transfert de gènes (non réalisé en 2026)
Fiche du TP (partie 1) + Fiche du TP (partie 2)
Le fichier de molécules à exploiter dans Geniegen 2 :
Ce site a été réalisé par Mme et Mr ESTHER

Ce module d’exercices a été conçu à partir du cours du prof de cette page à l’aide d’une intelligence artificielle (Nolej IA)
Introduction
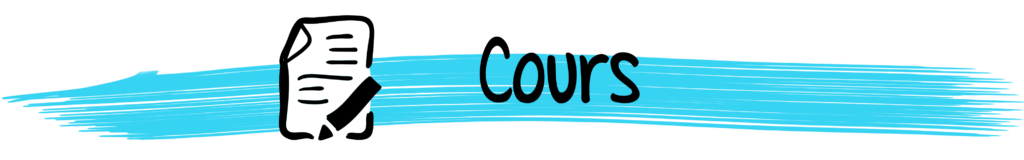
Dans le chapitre 1, on a étudié l’origine du génotype d’un individu et mis en évidence l’importance de la méiose (de ses brassages) et de la fécondation au cours de la reproduction sexuée.
On a montré que le génotype d’un individu est une unique combinaison d’allèles, des chromosomes, MAIS on doit rappeler qu’au sein d’une même espèces, on va retrouver les mêmes gènes, le même caryotype.
Les génomes des espèces évoluent également. Par exemple, les études des 30 dernières années, on permit de comprendre un peu mieux le génome humain et il en ressort quelques observations impressionnantes :
- dans tous nos chromosomes on constate la présence de portions d’ADN viral ;
- lorsque l’on compare notre caryotype à celui des grands singes (chimpanzé, gorilles, etc) on constate que notre chromosome 2 est issue de la fusion de deux chromosomes ;
- certains gènes ont été dupliqués plusieurs fois, par exemples celui de l’amylase, les gènes des globines ou des opsines ;
Problématique
Comment les génomes peuvent-ils se diversifier aux différentes échelles de temps ?
Ce site a été réalisé par Mme et Mr ESTHER
I – Les mécanismes de diversification
1) Les mutations, sources de nouveaux allèles
Les mutations génétiques se produisent notamment au cours de la réplication qui précèdent les divisions cellulaires (mitose/méiose). Elles peuvent également être liés à des facteurs mutagènes (UV , radiations, produits chimiques)…. Un grand nombre mutations est corrigée par des protéines de réparation de l’ADN, mais pas toutes.
Quelques éléments à garder en tête pour bien comprendre comment les mutations permettent la formation de nouveaux allèles :
- si les mutations affectent des séquences codantes de l’ADN (gènes) ou des séquences de régulation, elles peuvent modifier le phénotype des individus concernés ;
- si les mutations se produisent dans les cellules germinales, à l’origine des gamètes, elles seront transmises à la descendance et peuvent affecter les générations futures ;
- si les mutations diminuent les chances de survie, ou de succès reproducteurs, elles peuvent disparaître (contre-sélection naturelle) ; à l’inverse si les mutations augmentent les chances de survie et de succès reproducteur, elles peuvent être conservées au cours de l’évolution et devenir de plus en plus fréquentes dans les populations ;
- les méthodes récentes d’études de l’ADN (génomique, métagénomique) permettent de dater certaines mutations et donc de retracer l’histoire des génomes ;
Voici un exemple :
- gène de la régulation de la lactase (voir chap T1A4) :
- Une mutation d’un nucléotide (SNP) est apparue dans les populations pastorales (élevant du bétail) entre -10 000 et – 5 000 ans et a permis le maintien de la digestion du lactose (sucre du lait) à l’âge adulte.
- Apparition d’une mutation -> Nouvel allèle (polymorphisme) -> nouveau phénotype -> avantage sélectif ® propagation dans certaines populations de l’espèce = diversification des génomes.
- Une mutation d’un nucléotide (SNP) est apparue dans les populations pastorales (élevant du bétail) entre -10 000 et – 5 000 ans et a permis le maintien de la digestion du lactose (sucre du lait) à l’âge adulte.
2) Les crossing-overs inégaux, sources d’enrichissement du génome
Des anomalies (=erreurs) peuvent survenir au cours des crossing-over. Si les portions échangées sont inégales, un crossing-over peut parfois aboutir à une duplication d’un gène.
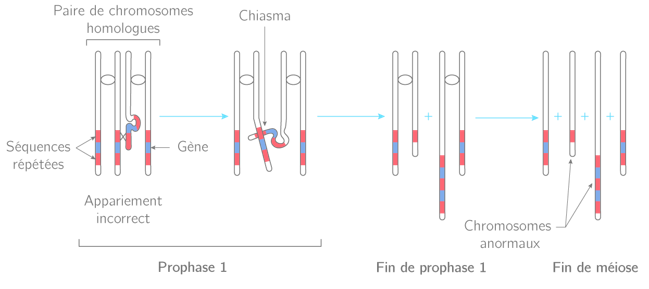
Schéma d’un crossing-over inégal entrainant pour un chromatide, une perte de gène ; pour l’autre chromatide, un gène dupliqué (en 2 copies) – Source : Kartable.fr
A court terme, ces crossing-over inégaux peuvent conduire à des maladies chez les individus.
Par exemple, deux maladies ont été identifiées suite à un crossing-over inégal du gène humain PMP22 codant pour une protéine de myéline intervenant dans le bon fonctionnement des neurones :
- Les individus héritant de 2 copies du gène PMP22 sont atteints du syndrome de Charcot Marie Tooth (CMT) avec une atteinte des nerfs périphériques entrainant une faiblesse musculaire
- Les individus n’ayant aucune copie du gène PMP 22 sont atteints du syndrome HNPP (hypersensibilité des nerfs périphériques de la pression) avec des épisodes soudains et récurrents de faiblesse musculaire, de picotements et d’engourdissements
Ces mécanismes sont sources de troubles mais ils sont parfois sources de diversification du vivant.
A long terme, ces crossing-over inégaux peuvent conduire à la mise en place de nouveaux gènes, donc à la complexification des génomes d’une espèce.
- Etape de crossing-over inégal à l’origine d’un gène dupliqué
Dans certains cas, la 2ème copie dupliqué du fait d’un crossing-over inégal, a peu d’effet sur l’individu qui la porte. Le gène d’origine sera appelé gène ancestral.
2. Des générations plus tard, une mutation peut survenir sur une des 2 copies uniquement et être à l’origine d’une protéine légèrement modifiée
3. Au cours du temps, chaque copie du gène ancestral accumule ses propres mutations : on parle alors de 2 gènes différents. Ces 2 gènes étant très proches et ayant un gène ancestral commun pour origine, on dit qu’ils forment une famille multigénique.
La famille multigénique des Opsines
Les opsines sont des protéines fabriquées dans les cellules de la rétine de l’œil. Ces protéines sont des pigments qui captent certaines longueurs d’ondes (couleurs) de la lumière.
Chez l’humain, on observe la présence de 3 gènes codant pour des opsines : sur le chromosome X, les gènes des opsines M (verte) et L (rouge), et sur le chromosome 7, le gène des opsines S (bleue).
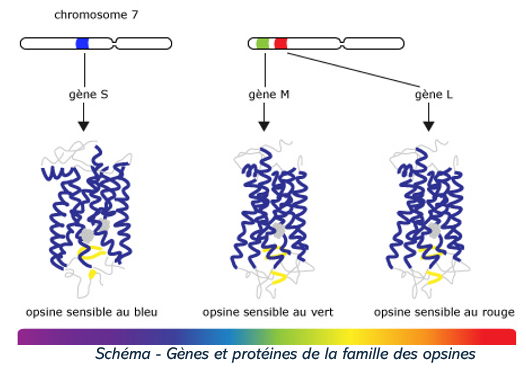
La comparaison de ces 3 gènes chez les mammifères et les primates permet de retracer l’histoire de la famille multigénique des opsines.
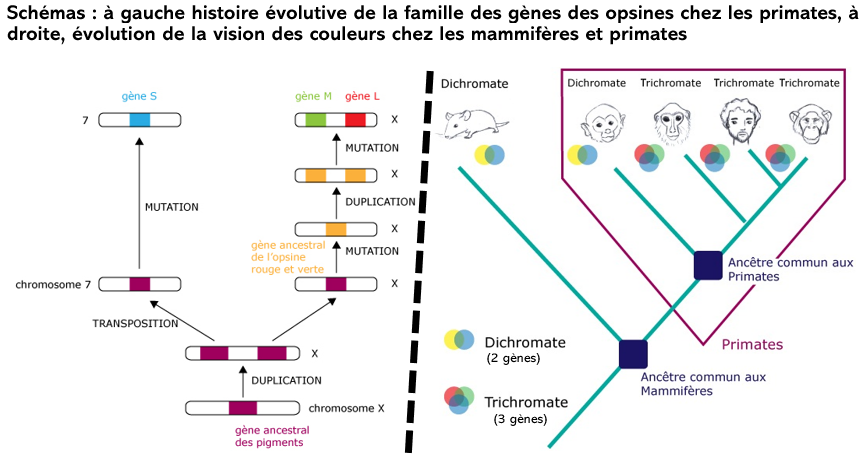
On voit que le gène ancestral a subi une duplication sur le chromosome X, avant de subir une transposition sur le chromosome 7. Des mutations ont modifié la sensibilité des opsines produites aux couleurs. Une deuxième duplication, suivi de mutations, s’est produite chez un ancêtre des primates trichromates (avec une vision des 3 couleurs, trichromatie).
3) La polyploïdisation, sources d’enrichissement du génome
La polyploïdie est le fait, chez un être vivant, de posséder un patrimoine chromosomique au moins égal à 3 lots complets de chromosomes (3n) ou plus.
Le phénomène est assez rare dans le règne animal. Les végétaux supportent beaucoup mieux la polyploïdie (car les individus peuvent survivre longtemps grâce à la multiplication végétative).
Les études actuelles montrent que 70 % des Angiospermes ont connu au moins un évènement de polyploïdisation. De nombreuses espèces cultivées par l’homme sont polyploïdes :
- La banane commerciale (sans pépin) est triploïde donc 3n
- Les pommes de terre, le blé dur, le coton et les cacahuètes sont 4n (tétraploïde)
- Les fraises cultivées sont mêmes 8n (octoploïdes) !
Les mécanismes de survenue de plantes polyploïdes sont variés chez les végétaux : fécondation entre un gamète et une cellule 2n ; ou, fécondation des 2 gamètes d’espèces différentes (n’ayant pas toujours le même nombre de chromosomes).
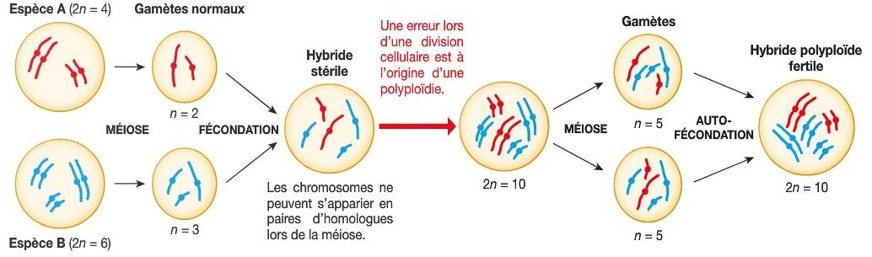
Exemple d’un mécanisme génétique à l’origine de polyploïdisation (source : qcm-svt.fr)
Ce site a été réalisé par Mme et Mr ESTHER
II – Les transferts horizontaux d’ADN entre des êtres vivants
On appelle transferts génétiques horizontaux des échanges de matériels génétiques en dehors de la reproduction sexuée.
Il faut bien distinguer les transferts génétiques horizontaux (par rapport à l’axe du temps), c’est-à-dire entre 2 individus contemporains et les transferts génétiques verticaux, c’est-à-dire un parent et ses descendants.
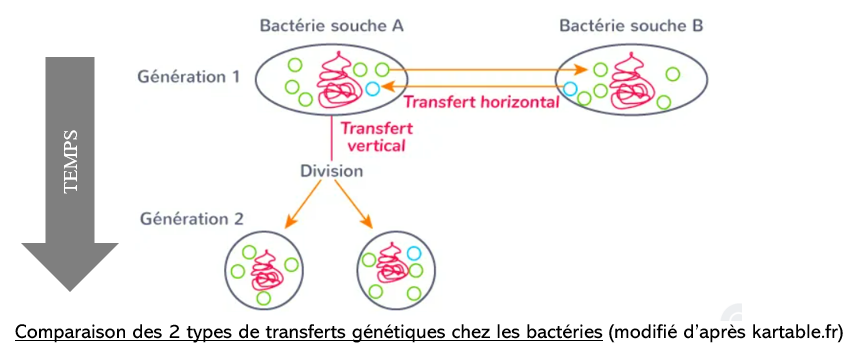
1) Les transferts horizontaux d’ADN entre les bactéries
Chez les bactéries, ces transferts sont connus depuis 1928 et les célèbres expériences de Griffith sur les souches R (rugueuses, non virulentes) et S (lisses, virulentes) des pneumocoques.
Lors de ces expériences, Griffith et son équipe ont montré que des transferts d’informations génétiques se produisaient entre bactéries. Plus tard, Avery et MacLeod montreront que ces transferts se font par des échanges d’ADN entre les bactéries.Pour rappel, ces expériences ont joué un rôle clé dans l’identification de l’ADN en tant que molécule porteuse des informations génétiques.
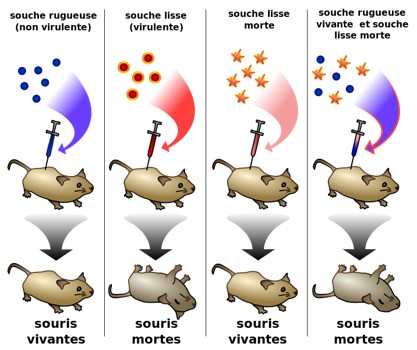
Représentations des expériences historiques de Griffith réalisées en 1928
On sait désormais que ces échanges entre bactéries peuvent se faire selon plusieurs modalités :

- Transformation bactérienne :
intégration d’ADN libre présent dans l’environnement (comme dans l’expérience de Griffith) ;
- Transduction bactérienne :
transfert d’ADN par l’intermédiaire d’un virus (bactériophage) emportant des fragments du génome d’une bactérie donneuse vers une bactérie receveuse ;
- Conjugaison bactérienne :
transfert d’ADN entre deux bactéries par l’intermédiaire d’un « pilus bactérien », formant un pont entre les bactéries : une bactérie donneuse fait une copie d’un fragment de son ADN puis le transfère dans le cytoplasme d’une autre bactérie;
Les transferts horizontaux sont très fréquents au sein des populations bactériennes et ont des effets importants sur l’évolution de ces populations.
Quelques exemples de ces propriétés de transferts d’ADN horizontal chez les bactéries : ces échanges peuvent permettre d’enrichir le microbiote intestinal en fonction de notre alimentation – Exemple : la digestion des makis selon les différentes populations humaines

- ces échanges ont permis la production de protéine humaine comme l’insuline par les bactéries.
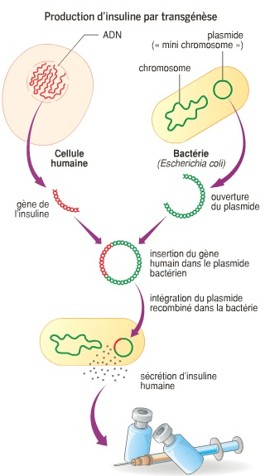
En effet, de l’ADN contenant le gène de l’insuline humain a été introduit dans l’ADN de bactéries qui ont alors produit de l’insuline utilisée dans le traitement du diabète.
- ces échanges jouent un rôle essentiel dans l’acquisition de résistances aux antibiotiques chez les bactéries.
En effet, une bactérie mutante qui acquièrent une résistance à un antibiotique peut transmettre cette mutation à ces cellules-filles (par mitose) mais aussi à d’autres cellules de son environnement par conjugaison bactérienne (voir Enseignement Sci.)
Transition : Nous avons observé l’importance des transferts horizontaux dans les populations bactériennes. On peut donc se demander si de tels mécanismes existent dans d’autres groupes d’êtres vivants et quels son
2) Les transferts horizontaux d’ADN entre deux individus d’espèces différentes
Les scientifiques ont mis en évidence de nombreux événements de transferts génétiques horizontaux chez l’ensemble des êtres vivants (animaux, végétaux, champignons, virus, …). Ces événements sont rares (quelques milliers à l’échelle de l’évolution) mais sont très importants dans l’apport de nouveaux gènes.
Les transferts à partir d’ADN viral sont plus fréquents du fait des mécanismes de propagation des virus. Ceux-ci ne possèdent pas des molécules de lecture de l’ADN et de fabrication des protéines. Par contre, les virus possèdent des mécanismes leur permettant d’envoyer leurs séquences génétiques dans l’ADN de la cellule infectée et de la forcer à lire ces séquences. Les cellules infectées par des virus sont donc enrichies de nouvelles séquences ADN.
Pour donner quelques illustrations sur les transferts horizontaux de gènes, on peut citer :
- le gène permettant la fabrication des enzymes à l’origine des caroténoïdes chez le Puceron proviendrait d’un transfert horizontal depuis le génome d’un champignon ;
- un gène permettant la dégradation de fibres spécifiques du café à l’origine de l’enzyme mannanase a été transféré d’une bactérie vers un insecte ravageur du café, le scolyte du café ;
- des exemples de transferts de gènes ont été mis en évidence entres des plantes parasites et leurs hôtes :
- la plante parasite Rafflesia a récupéré un gène de son hôte la liane Tetrasigma ;
- la plante parasite Striga a récupéré plusieurs gènes mitochondriaux de son hôte le Sorgho ;
- le gène de la syncitine permettant la mise en place du placenta chez les mammifères placentaires (et chez le lézard Mabuya, voir exemple développé) ; ce gène provient par transfert horizontal d’un rétrovirus et code pour les protéines de l’enveloppe de celui-ci ;
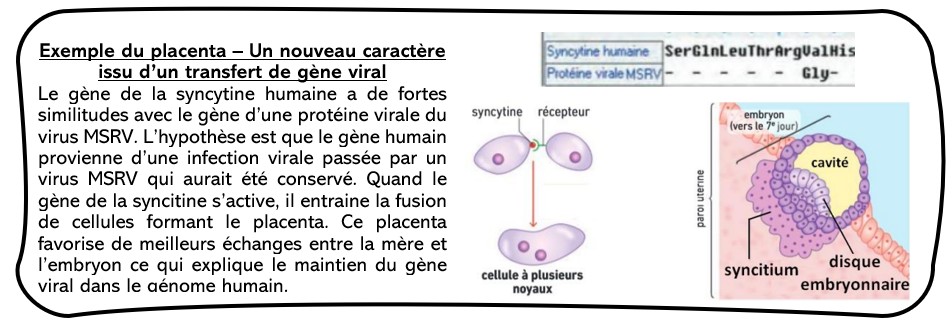
Cette hypothèse est d’autant plus solide que le transfert de ce gène qui a eu lieu chez les ancêtres des Mammifères placentaires s’est à nouveau produit plus récemment chez une espèce de Lézard !
Point méthode : un exemple assez détaillé peut servir d’argument ! « Des scientifiques ont pu comparer les gènes de telle et telle espèce sur Geniegen ou BLAST et ont pu montrer que… »
En guise d’exemple précis, un article publié sur le CNRS : « Quand un lézard devient placentaire »
Il est communément admis que les mammifères sont pour la plupart des placentaires, à quelques exceptions près comme l’ornithorynque qui pond encore des œufs. Ce qui est moins connu c’est l’existence de quelques non-mammifères qui possèdent un véritable placenta, finalement très proche de celui des mammifères. C’est le cas d’un lézard des Andes, le Mabuya.

De précédents travaux avaient montré que chez les mammifères, la formation du placenta est rendue possible par les syncytines, des gènes d’origine rétrovirale « capturés » par nos ancêtres et conservés fonctionnels sur des millions d’années d’évolution. Dans la présente étude publiée dans les PNAS, l’équipe de recherche coordonnée par Thierry Heidmann, chercheur CNRS et directeur du laboratoire « Physiologie et pathologie moléculaires des rétrovirus endogènes et infectieux » (CNRS/Université Paris-Sud) à Gustave Roussy, met en évidence que le lézard Mabuya a lui aussi « capturé » une syncytine il y a près de 25 millions d’années. Cette syncytine est proche de celles que l’on trouve chez les mammifères, et sa capture coïncide avec l’apparition de ce lézard très particulier. Ces résultats montrent que ce phénomène de capture et d’utilisation par l’hôte de gènes rétroviraux n’est pas restreint aux seuls mammifères et qu’il est un élément majeur dans la formation du placenta chez les vertébrés. Un exemple de convergence évolutive entre l’homme et le lézard !

Source : https://insb.cnrs.fr/fr/cnrsinfo/quand-un-lezard-devient-placentaire + https://www.pnas.org/content/114/51/E10991
3) Les conséquences de ces transferts à l’échelle de l’évolution
Les transferts de gènes entre espèces sont rares chez les individus. Les scientifiques en ont identifié « seulement » quelques milliers chez les êtres vivants actuels. Cependant, elles permettent des avancées évolutives rapides quand elles présentent un avantage pour l’espèce receveuse et favorise donc la diversité des génomes.
Certains de ces nouveaux gènes récupérés par transfert horizontal peuvent procurer un avantage sélectif et être ainsi conservés dans les génomes. Le logiciel BLAST permet de comparer la similitude de séquences d’ADN et a ainsi permis de découvrir des ressemblances très fortes entre les gènes de 2 espèces très éloignées d’un point de vue évolutifs.


Schéma montrant les nombreux événements de transferts de gènes provenant de bactéries, d’archées et de champignons identifiés chez les Végétaux
Pour étudier les transferts horizontaux et l’acquisition de nouvelles fonctions chez les plantes « terrestres », une équipe de scientifique a séquencé le génome d’une mousse Physcomitrella patens et a mis en évidence plus de 50 évènements de transferts de gènes provenant de bactéries, d’archées et de champignons.
Chez l’Homme, on estime que 10% de notre génome est d’origine virale.
On connait certains virus, comme celui de la varicelle, dont l’ADN a tendance à se fixer dans certaines cellules cérébrales lors d’une infection. A l’âge adulte, il peut se réactiver provoquant du zona. Cet ADN ne présente a priori pas d’avantages pour l’humain mais modifie le génome des individus infectés.
D’autres gènes humains que celui de la syncitine sont probablement issus d’un transfert de gènes d’une autre espèce même s’ils n’ont pas encore été identifiés.
Les études récentes laissent penser qu’une partie non négligeable de l’ADN non codant des chromosomes humains serait liée à des ajouts liés à des insertions d’ADN viral.
Ces transferts de gènes agissent donc comme des accélérateurs de l’évolution et permettent l’acquisition des nouveaux gènes de façon très rapide.
Ce site a été réalisé par Mme et Mr ESTHER
III – Les endosymbioses et la complexification des génomes
1) Une définition de l’endosymbiose
La symbiose est une association durable à bénéfices réciproques entre organismes d’espèces différentes. Cette association peut être particulièrement étroite si l’un des partenaires vit à l’intérieur des cellules ou des tissus de l’autre : on parle alors d’endosymbiose.
Dans la plupart des cas, l’organisme à l’intérieur des cellules procure un avantage nutritionnel à son hôte tandis que l’hôte procure un milieu protégé et stable.
On peut citer comme exemple d’endosymbiose le cas des coraux qui sont constitués par l’association d’un polype constructeur (animal) et d’algues unicellulaires, les zooxanthelles. Les coraux se développent dans des eaux claires ce qui permet la photosynthèse par les algues. Par ailleurs, on observe la fabrication de molécules antioxydantes par l’hôte (polype) qui protègent des effets toxiques de l’excès de dioxygène lié à la photosynthèse. L’association des deux organismes leur permet une meilleure adaptation à leur milieu mais elle impose des contraintes (ex : excès de dioxygène).
En résumé, l’endosymbiose associe étroitement les génomes des deux partenaires et contribue donc à une complexification des génomes.

2) Les mécanismes de l’endosymbiose à l’origine des organites
Des traces d’endosymbioses très anciennes entre bactéries et cellules eucaryotes sont à l’origine des mitochondries et des chloroplastes.
Les organites énergétiques tels que les mitochondries (chez les eucaryotes) et les chloroplastes (chez les eucaryotes photosynthétiques) sont transmis d’une génération à l’autre et font partie intégrante de la machinerie cellulaire. Leurs caractéristiques structurales et leurs génomes rappellent néanmoins ceux des bactéries. De nombreux arguments permettent donc d’affirmer que ces organites sont issus d’évènements passés d’endosymbiose (théorie endosymbiotique).
|
Encart – Les arguments en faveur de l’origine endosymbiotique des organites
|


Ainsi, les comparaisons de séquences génétiques ont permis de montrer que :
- Les mitochondries sont le résultat d’une endosymbiose (ayant probablement eu lieu il y a plus de 2 milliards d’années) d’une alpha-protéobactérie respiratoire dans une cellule eucaryote primitive
- Les chloroplastes sont le résultat d’une seconde endosymbiose (ayant probablement eu lieu entre 2 et 1,1 milliard d’années) d’une cyanobactérie photosynthétique dans une cellule eucaryote primitive. L’endosymbiose à l’origine des chloroplastes a probablement eu lieu sur une cellule ayant déjà des organites de type mitochondries (ou équivalent).
Pour aller plus loin…

3) Les mécanismes de transferts internes d’ADN entre les organites et le noyau
On constate par ailleurs que :
- une partie du génome mitochondrial et chloroplastique a été intégré au génome nucléaire des cellules hôtes eucaryotes
Par exemple, le gène de la grande sous-unité de la Rubisco (une enzyme du cycle de Calvin-Benson) est présent dans le noyau des cellules eucaryotes photosynthétiques alors que le gène de la petite sous-unité de la Rubiscoc est présent dans l’ADN du chloroplaste.
- une perte de gènes redondants dans l’ADN des organites (seul le gène présent dans le noyau est conservé).
Par exemple, le gène infA, codant pour un facteur d’initiation de la transcription, a été perdu dans l’ADN chloroplastique de nombreuses lignées d’Angiospermes. Au moins 24 événements de pertes de ce même gène (dans différents groupes d’Angiospermes) montrent que les mécanismes de rationalisation du génome (élimination des doublons dans le génome) sont fréquents à l’échelle de l’évolution.

Ces mécanismes ont participé à la transformation de l’endosymbiote en organite permanent. De plus, ces transferts internes entre l’ADN de la bactérie/organite et l’ADN nucléaire (= du noyau de la cellule eucaryote) se sont produits petit à petit au cours des générations. Ainsi, l’ADN nucléaire des cellules eucaryotes contenant des organistes s’est progressivement enrichi.
4) L’hérédité cytoplasmique
Certains gènes restent présents dans l’ADN des organites. Ces gènes continuent de produire des protéines et peuvent avoir des conséquences sur la santé des organismes qui les possèdent.
Par exemple, dans les espèces animales, les mitochondries sont apportées uniquement par les ovocytes/ovules mais pas par les gamètes mâles.
Ainsi, que l’on soit un homme ou une femme, toutes nos mitochondries nous viennent de notre mère, qui les a eu de sa propre mère, …
On parle d’hérédité cytoplasmique, c’est-à-dire du matériel génétique présent dans les organites localisés dans le cytoplasme (par opposition à l’ADN dit nucléaire, contenu dans le noyau).
Remarque : tous les mécanismes vus dans le chapitre 1 concernent uniquement l’ADN du noyau mais pas l’ADN des mitochondries (et des chloroplastes).
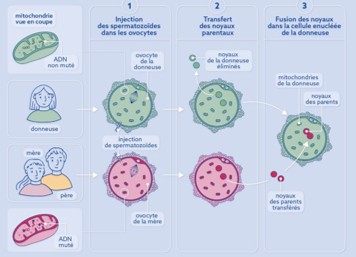
Une FIV à trois parents
Des allèles de gène des organites peuvent donc être à l’origine de maladies. L’institut Pasteur estime qu’une naissance sur 5000 est touchée par une maladie mitochondriale.
Par exemple, il existe des myopathies mitochondriales, c’est-à-dire dont l’origine vient de dysfonctionnements des mitochondries.
En 2026, en Angleterre une fécondation in vitro à 3 parents a été réalisée avec l’ADN nucléaire des 2 parents et le cytoplasme et les mitochondries d’une autre femme : on a parlé de FIV à 3 parents !
Conclusion
L’universalité de l’ADN et l’unicité de sa structure dans le monde vivant ont permis des échanges génétiques entre organismes non nécessairement apparentés.
Des échanges de matériel génétique, hors de la reproduction sexuée, ont ainsi enrichi le génome de nombreuses espèces. On trouve des traces de ces échanges en comparant les séquences génétiques d’espèces actuelles. Les deux principaux mécanismes d’enrichissement des génomes en dehors de la reproduction sexuée sont les transferts horizontaux et les endosymbioses.

Ce site a été réalisé par Mme et Mr ESTHER
Conclusion
Les échanges entres êtres vivants d’espèces différentes sont donc très fréquent au cours de l’évolution et participent à la complexification/diversification des génomes. Les génomes des êtres vivants aujourd’hui en portent les indices… notre ADN comporte ainsi des morceaux d’ADN viral, d’ADN mitochondrial (donc bactérien), etc.
Notre vision d’un arbre évolutif du vivant sous la forme d’un arbre aux branches bien distinctes et parallèles doit donc être partiellement revu : des échanges horizontaux et des événements d’endosymbiose jouent un rôle majeur dans l’évolution des génomes.
Ce site a été réalisé par Mme et Mr ESTHER

Cliquez sur l’image pour ouvrir le lien et vous entrainer à légender !

QCM1 – Je vérifie si j’ai compris les mécanismes de la symbiose.
Ce site a été réalisé par Mme et Mr ESTHER
Voici quelques exemples possibles de sujets de bac sur ce chapitre :
- exercices de type 1 (aucun sujet existant pour l’instant)
- exercices de type 2
- exercices de type ECE1